


Introducción
En sistemas de cultivo de agua dulce, el CO2 es principalmente producido por el metabolismo de los peces. En Salmónidos, por ejemplo, expira alrededor de 1,4 mg de CO2 por cada mg mg de oxígeno consumido (Colt and Tchobanoglous, 1981).
A diferencia de otros gases, el dióxido de carbono, al tomar contacto con el agua reacciona cuando este se disuelve, formando una mezcla entre CO2, ácido carbónico (H2CO3), bicarbonato (HCO3-) e iones carbonato (CO2-2).

En condiciones normales, el agua oxigenada pasa sobre el epitelio branquial, difundiendo el oxígeno disuelto pasivamente a través del epitelio celular de las lamelas secundarias hacia el torrente sanguíneo. Una vez en la sangre el oxígeno difunde a los eritrocitos, donde se une a la hemoglobina (Hb), circulando a los tejidos. Una de las características de la molécula de hemoglobina, es que al incrementar la acidez (H+), disminuye la afinidad por las moléculas de oxígeno (efecto Bohr) y en algunas especies la máxima capacidad de unión de oxígeno (efecto Root) (Wedemeyer, 1996).
El efecto Bohr, produce alteración en el transporte de oxígeno en salmónidos, cuando las concentraciones de CO2 superan los 20 mg/l (Wedemeyer, 1996). Este parámetro debe ser considerado como referencia, dado que aparentemente existen diferencias significativas entre las diferentes especies de salmónidos y estados de desarrollo, considerándose en algunos casos como óptimo10 mg/l.
El incremento de CO2 a nivel sanguíneo (hipercapnia), trae como consecuencia un desbalance iónico conocido como acidosis respiratoria. Entre los signos clínicos asociados a aumento de los niveles de CO2 se encuentra letargia, incremento de la frecuencia opercular y en casos severos muerte.
La exposición prolongada de los peces a niveles de CO2, sobre lo considerado como aceptable produce una condición denominada Nefrocalcinosis, lo cual produce depósitos calcáreos en el riñón.
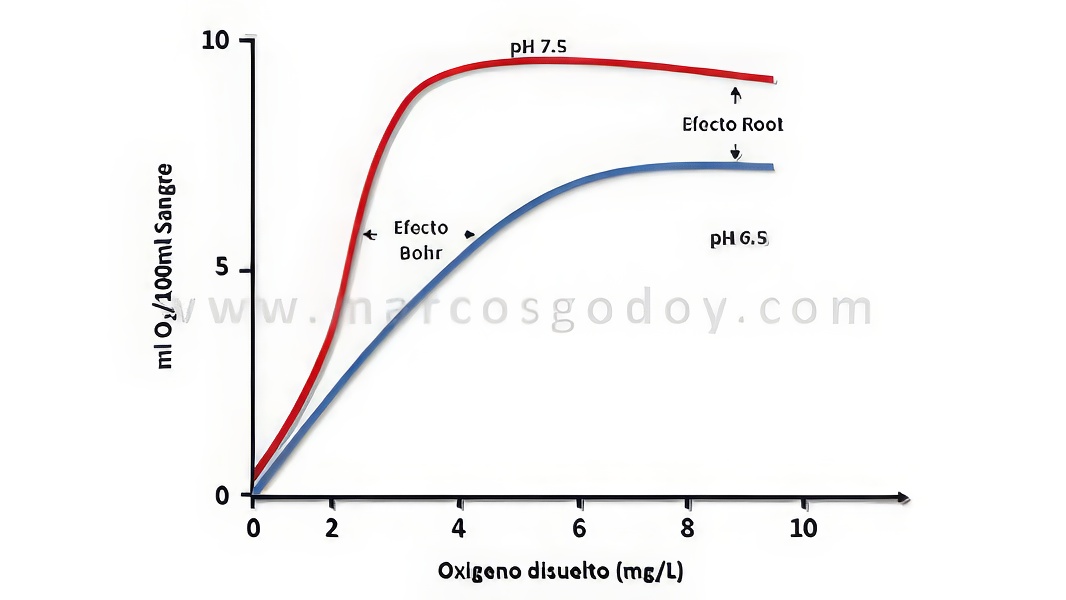
Figura 1: Efecto de la disminución del pH sanguíneo debido a hipercapnia, sobre la capacidad de transporte de oxígeno de la hemoglobina (Wedemeyer, 1996).
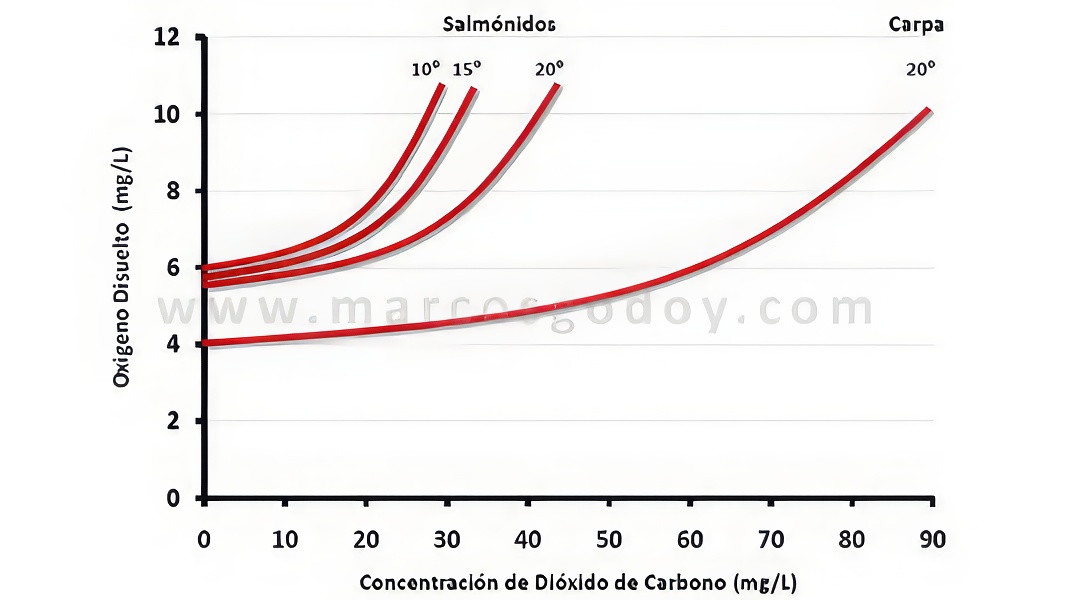
Figura 2: Concentración de oxígeno disuelto necesaria para satisfacer una moderada actividad de natación, a medida que la concentración de CO2 incrementa. Se observa diferencias en la tolerancia en relación a la temperatura y especie (Basu, 1959 en Wedemeyer, 1969).
Como citar
Godoy, M. 2009. Hipercapnia y CO2 en Agua Dulce. https://bit.ly/4bflOkl.
